转座子问答:活性、插入偏好与基因捕获
本文保留2019年的问答观点和讨论中的不确定性,不将个别发言概括为普遍的因果结论。
蒋宁教授专访:与跳跃基因共舞
有关转座子的问答环节
CGM:好像在物种杂交的过程中会激活很多转座子?
对。比如A和B各有一种表观状态,那么A和B杂交以后新的基因组中,表观状态会不同,那么有些转座子就会被激活。比如本来有甲基化,杂交后没有甲基化了,不再沉默,转座子就被激活了。但是并不是所有的情况下都会激活,也不是所有的转座子都会激活。
CGM:您觉得在最近新杂交形成的物种中和很久之前的杂交形成的物种中,转座子有哪些差别?
已经杂交很久的可能已经达到了一种平衡。比如一般植物当中真正活跃的转座子其实是比较少的(而玉米则是一个例外)。像mPing是我们找了半天,才在组织培养中检测到。所以说已经杂交很久的物种中转座子活性可能比较低。而新杂交形成的物种中可能有更多转座子在活动。
CGM:转座子活跃度和环境之间有何关系?
转座子很有名的一点就是,在环境胁迫时,转座子会被活化,会开始跳跃。这里受访者也以压力作了生活化比喻;这一讨论不能据此推导个人压力必然通过转座子导致疾病。
CGM:在不同的物种中,比如野生作物、栽培作物,它们之间转座子有没有各自的pattern?
这个我没有特别研究过。我记得几年前有一篇文章说teosinte(大刍草,玉米的野生近缘类群)的转座子比玉米里要多。但其他种的我没有注意到。现在有个问题是由于各个基因组测序的准确度和完整性都不一样,即使差异存在,但很难准确的说哪个转座子多,哪个少。
CGM:最开始人们发现转座子具有调节功能,后来发现在结构上面、细胞分化中它也有功能。最近还发现了哪些转座子的新功能?
最初是McClintock发现了转座子具有调节功能。现在可以说转座子几乎在所有的生命过程当中都有影响。比如说我们人类的免疫系统,就是由一个转座子进化而来的。我们的各种免疫蛋白是由不同的蛋白domain相互切割然后重组而成的,而这个重组酶就是一个转座酶。还有一个例子就是着丝粒中间也有转座子在起作用,就是说它也会影响基因组的结构。
CGM群有关转座子的讨论整理
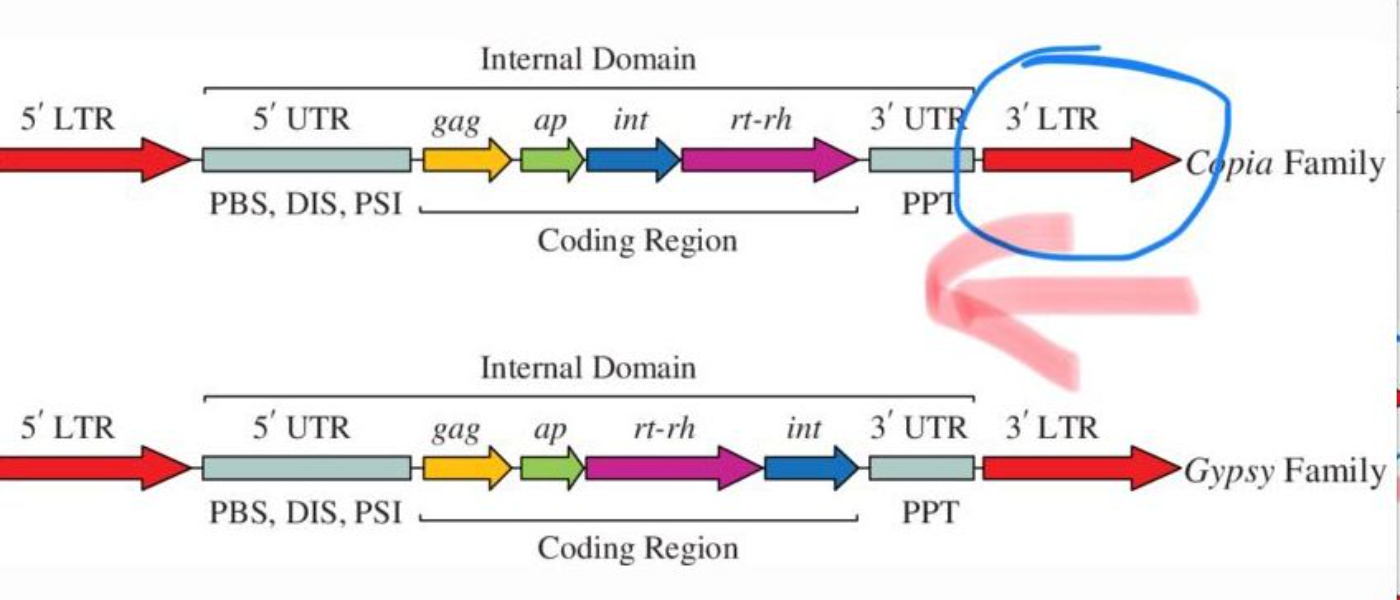
张盼盼CNRS:我有一个问题,在水稻基因组里,tos17(LTR-copia)burst后内部发生不同的排列,LTR变成反向,并且长度变长。情况不多,这个TE是不是misassembled?
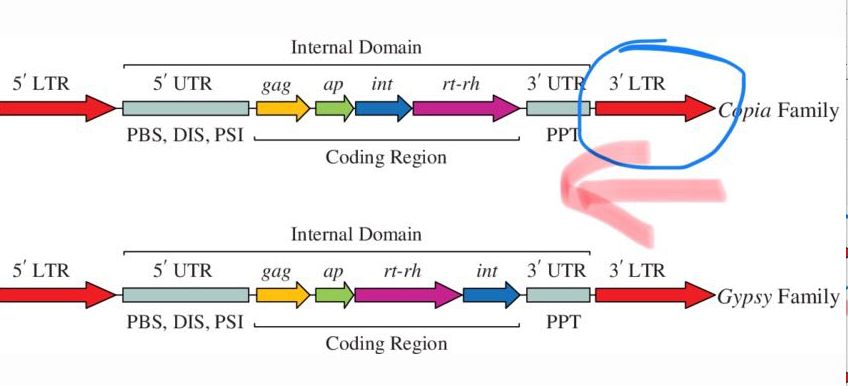
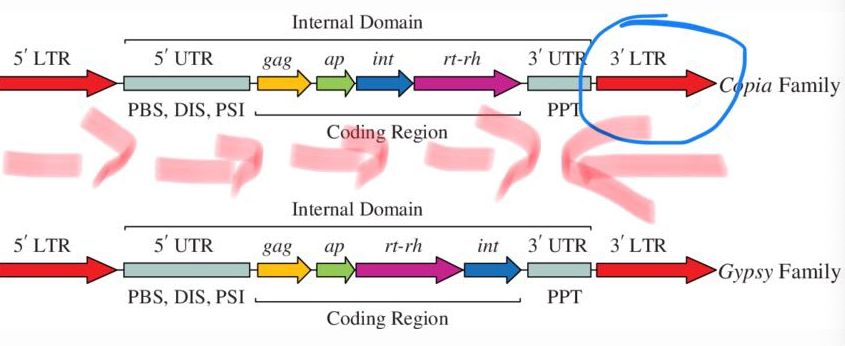
区树俊 ISU:有可能是两个LTR元件融合的结果,案例不多的话可能就是组装错误 。
张恒友-DanforthCenter:TE跳跃是在什么情况下发生的?在野生,栽培作物里面有没有发现什么各自的pattern,比如水稻,大豆。
肖军-UPenn、晁金泉-CATAS:TE的活跃与短时间(10-20年)内的环境变换适应性的关系?比如是否可以将植物(有很多不同的品种)从平原带到高原,然后能被环境诱导快速的产生适应性?
区树俊 ISU:TE对植物适应性的作用还很不明显,大部分都算是happy accident。用TE来快速诱导local adaptation就更困难了。
肖军-UPenn:谢谢,这个是因为时间不够长么?
区树俊 ISU:时间短是一个方面,另一个方面是TE活动的频繁程度。短时间(<100年)内我们很难观测到TE的爆发。如果依赖TE来诱导适应性,还不如构建个t-DNA突变体库进行筛选来得快了。
肖军-UPenn:不同类型TE的活跃度(转录活性,转座能力)受环境影响是否有差异?如果有,可能的机理如何?另外不同类型的TE转座后插入位置是否有些偏好性?
区树俊 ISU:目前发现TE的转录活性跟胁迫和杂交相关。不同类型的TE的偏向性不一样,LTR趋向于在着丝粒区,DNA elements趋向于基因区,但大部分都不会插入到基因里,因为选择压力太大(致死) 。
张恒友-DanforthCenter:好像有些是野生材料的一个或者突然的几个TE insertion,就直接把wild 变成中间材料,这样domestication才开始,有可能?
区树俊 ISU:TE对local adaptation 的作用还不是很明确,这也是目前我们在研究的。很多对驯化有帮助的TE是happy accident,不断地插入,刚好有一个work了。原因只能猜 有可能是胁迫。
张恒友-DanforthCenter:可能胁迫的特性,早已经不在了。
肖军-UPenn:我还有一个问题:TE的跳跃与染色质开放调控区域(比如动物中的enhancer)的产生与消失的关系?特别是在环境变化的诱发下。
区树俊 ISU:开放染色质跟各种活动都有关,跟TE活动也有关。其他活动可以是转录,调控,突变等等各种需要和核DNA直接接触的活动。
张盼盼CNRS:还有TE跳跃,基因与之一起跳跃的情况?如果因为活跃基因中的部分片段在基因组中存在高度重复率,举例来说200bp,是不是不能当作“与之共舞”?
区树俊 ISU:有的,大部分类型的TE都会意外捕获基因或非TE序列,但一般情况下频率较低。有两类TE会持续地捕获基因序列。一类是Helitron,会通过rolling-circle的复制机制滚动捕获附近的基因序列。另一类是Pack-MULE,可能通过捕获genicDNA来携带很多基因片段。这两类转座子捕获的基因片段都不完整,其可能的功能及进化意义也是我们研究的一个方向。
#注:以下来自 肖军-UPenn (Q)跟区树俊 ISU (A) 的对话
Q:TE与快速的local 适应性的关系现在不是很positive?
A:很不明确。
Q:就是插入是随机,然后还要看选择?
A:嗯,它就是产生很多变异。至于有没有用,大部分应该都没有用。
Q:那TE跳跃的贡献是什么?
A:贡献就是产生变异。
Q:目前在作物中有多少案例?
A:有好些; 番茄的sun locus;血橙的rubi;玉米的hopscotch;人类的LINE1;你搜一下,不少了;实际上我觉得这不断的插入还是非常有帮助的;虽然应该也会导致大量的致死事件。现在我们看到的都是幸存者偏差。
评论(0)
登录后即可发表评论。
登录暂无评论,来发表第一条评论吧!